Virus Newcastle (Newcastle disease virus, NDV) là tác nhân gây bệnh Newcastle, một trong những bệnh truyền nhiễm quan trọng nhất trên gia cầm toàn cầu. Khả năng gây bệnh của NDV chịu ảnh hưởng bởi nhiều yếu tố, bao gồm đặc điểm di truyền, cấu trúc bộ gen, chức năng của các protein virus cũng như cơ chế tương tác với tế bào vật chủ. Việc hiểu rõ mối quan hệ phát sinh chủng loại, cấu trúc virus, chức năng các protein và cơ chế phân tử liên quan đến quá trình xâm nhiễm, nhân lên và gây bệnh là cơ sở quan trọng cho công tác chẩn đoán, giám sát dịch tễ, phát triển vaccine và kiểm soát bệnh Newcastle hiệu quả.
1. Phân loại và cách đọc cây sinh dòng
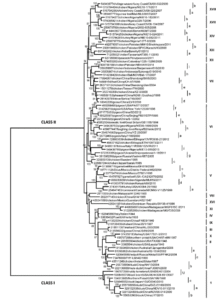
Hình 1. Cây phát sinh chủng loại của virus Newcastle (NDV) ( Swayne et al. (2020))
Theo hệ thống phân loại phát sinh chủng loại hiện nay, NDV được chia thành hai nhóm lớn là class I và class II. Class I có mức độ đa dạng di truyền thấp, trong khi class II gồm nhiều genotype khác nhau và chứa phần lớn các chủng virus gây bệnh trên gia cầm. Việc phân loại genotype dựa trên các tiêu chí di truyền thống nhất quốc tế, giúp theo dõi sự tiến hóa và lưu hành của virus.
Nhiều chủng trước đây được gọi là VIIh, VIIi hoặc VIIk hiện đã được xếp chung vào subgenotype VII.2 theo hệ thống danh pháp cập nhật năm 2019. Vì vậy, khi đối chiếu các tài liệu cũ và mới, cần hiểu rằng các tên gọi này trong nhiều trường hợp đang đề cập đến cùng một nhóm virus lưu hành ngoài thực địa.
2. Cấu trúc virus và ý nghĩa chức năng
Virus Newcastle (NDV) thuộc chi
Avulavirus, họ
Paramyxoviridae và là serotype 1 của nhóm avian paramyxovirus. Đây là virus RNA sợi đơn, chiều âm (-), không phân đoạn và có vỏ bọc lipid bên ngoài. Virus có kích thước khoảng 200-300 nm, tương đối bền vững trong môi trường nhưng dễ bị bất hoạt bởi nhiệt độ cao, chất tẩy rửa, dung môi hòa tan lipid và các chất oxy hóa.
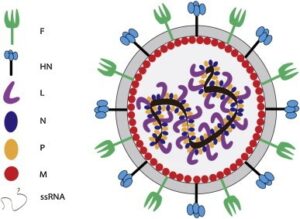
Hình 2. Cấu tạo virus Newcastle (NDV) (Ganar et al., 2014)

Hình 3. Cấu trúc bộ gen của virus Newcastle (NDV), mỗi protein nucleocapsid (NP) có khả năng gắn hiệu quả với sáu nucleotide (Ganar et al., 2014)
- Bộ gen NDV dài khoảng 15,2 kb và tuân theo “quy luật số sáu” (rule of six), nghĩa là tổng số nucleotide luôn là bội số của sáu, một đặc điểm quan trọng giúp virus nhân lên hiệu quả. Bộ gen gồm sáu gen chính mã hóa cho các protein N, P, M, F, HN và L. Trong đó, gen P còn có thể tạo thêm protein V và W thông qua cơ chế chỉnh sửa RNA.
- Protein N liên kết với RNA bộ gen để tạo thành nucleocapsid và cùng với protein P, L hình thành phức hợp ribonucleoprotein tham gia vào quá trình phiên mã và sao chép virus. Protein M nằm dưới lớp vỏ lipid, có vai trò lắp ráp và giải phóng các hạt virus mới khỏi tế bào nhiễm. Protein L là enzyme RNA polymerase chịu trách nhiệm tổng hợp mRNA và sao chép bộ gen virus.
- Hai glycoprotein bề mặt quan trọng nhất của NDV là F và HN. Protein HN giúp virus nhận diện và bám vào thụ thể trên bề mặt tế bào vật chủ, trong khi protein F chịu trách nhiệm hòa màng và đưa bộ gen virus vào bên trong tế bào. Đây cũng là hai kháng nguyên trung hòa chính, đóng vai trò quan trọng trong đáp ứng miễn dịch bảo hộ sau nhiễm tự nhiên hoặc tiêm vaccine.
- Ngoài các protein cấu trúc, NDV còn tạo ra protein V và W chỉ xuất hiện trong tế bào nhiễm. Trong đó, protein V có khả năng ức chế đáp ứng interferon của vật chủ, giúp virus né tránh miễn dịch bẩm sinh và góp phần làm tăng độc lực của virus.
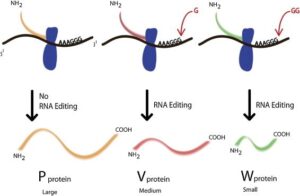
Hình 4. Cơ chế tạo protein V và W thông qua chỉnh sửa RNA (Ganar et al., 2014)
3. Cơ chế phân tử của sinh bệnh học
3.1. Các protein cấu trúc và chức năng của virus Newcastle
- Protein nucleocapsid (N) là protein xuất hiện nhiều nhất trong hạt virus, có chức năng bao bọc và bảo vệ RNA bộ gen khỏi sự phân hủy bởi các enzyme của vật chủ. Protein này liên kết chặt chẽ với RNA để tạo thành lõi nucleocapsid có cấu trúc xoắn đặc trưng. Cùng với protein P và protein L, protein N hình thành phức hợp ribonucleoprotein (RNP), đóng vai trò là khuôn mẫu cho quá trình phiên mã và sao chép RNA của virus. Do đó, protein N có vai trò trung tâm trong việc duy trì tính ổn định của bộ gen và đảm bảo sự nhân lên hiệu quả của NDV.
- Protein phosphoprotein (P) là thành phần hỗ trợ thiết yếu cho hoạt động của hệ thống polymerase. Protein này liên kết với protein L để tạo thành phức hợp RNA-dependent RNA polymerase, chịu trách nhiệm tổng hợp mRNA và sao chép bộ gen virus. Ngoài vai trò tham gia vào quá trình nhân lên, protein P còn điều hòa sự tương tác giữa polymerase và nucleocapsid, giúp đảm bảo RNA virus được sao chép chính xác. Một số nghiên cứu cho thấy protein P cũng có thể ảnh hưởng đến độc lực của NDV, mặc dù mức độ ảnh hưởng còn phụ thuộc vào chủng virus và loại tế bào cảm nhiễm.
- Protein matrix (M) nằm giữa nucleocapsid và lớp vỏ lipid bao ngoài của virus. Đây là protein đóng vai trò quan trọng trong quá trình lắp ráp virion và giải phóng virus khỏi tế bào nhiễm thông qua cơ chế nảy chồi (budding). Bên cạnh đó, protein M còn tham gia điều hòa quá trình tổng hợp RNA virus và tương tác với nhiều thành phần của tế bào chủ. Do có mức độ bảo tồn cao giữa các chủng NDV, protein M thường được sử dụng trong các nghiên cứu về tiến hóa và dịch tễ học phân tử.
- Protein fusion (F) là glycoprotein bề mặt giữ vai trò quyết định trong quá trình xâm nhập tế bào và là yếu tố độc lực quan trọng nhất của NDV. Protein này được tổng hợp dưới dạng tiền chất F0 và phải được cắt thành hai tiểu đơn vị F1 và F2 mới có khả năng hoạt động. Sau khi được hoạt hóa, protein F xúc tiến quá trình hòa màng giữa virus và tế bào vật chủ, đồng thời thúc đẩy sự hình thành hợp bào (syncytium), tạo điều kiện cho virus lan truyền trực tiếp giữa các tế bào. Đặc điểm của vị trí cắt trên protein F có liên quan chặt chẽ đến độc lực của virus. Ở các chủng lentogenic, vị trí cắt chỉ được nhận diện bởi một số protease ngoại bào có mặt chủ yếu ở đường hô hấp và đường tiêu hóa nên virus thường chỉ gây nhiễm khu trú. Ngược lại, ở các chủng velogenic, vị trí cắt chứa nhiều amino acid kiềm liên tiếp, cho phép được hoạt hóa bởi enzyme furin hiện diện ở nhiều loại mô khác nhau, từ đó tạo điều kiện cho virus lan truyền toàn thân và gây bệnh nặng. Vì vậy, trình tự amino acid tại vị trí cắt của protein F hiện được xem là dấu ấn phân tử quan trọng nhất để đánh giá độc lực của NDV.
- Protein hemagglutinin-neuraminidase (HN) là glycoprotein bề mặt thứ hai của NDV và hoạt động phối hợp chặt chẽ với protein F trong quá trình nhiễm. Protein HN có khả năng nhận diện và gắn vào các thụ thể chứa acid sialic trên bề mặt tế bào vật chủ, giúp virus bám dính vào tế bào đích. Đồng thời, hoạt tính neuraminidase của HN giúp loại bỏ các phân tử acid sialic dư thừa, hỗ trợ giải phóng virus mới hình thành và hạn chế hiện tượng kết dính giữa các virion. Sự tương tác giữa HN và F là điều kiện cần thiết để quá trình hòa màng diễn ra hiệu quả. Ngoài vai trò trong cơ chế gây bệnh, HN còn là một trong những kháng nguyên trung hòa quan trọng nhất, kích thích cơ thể tạo đáp ứng miễn dịch bảo hộ sau nhiễm tự nhiên hoặc tiêm vaccine.
- Protein L là protein có kích thước lớn nhất trong bộ gen NDV và là thành phần xúc tác chính của hệ thống polymerase. Protein này chịu trách nhiệm tổng hợp mRNA, sao chép bộ gen RNA và thực hiện các quá trình xử lý sau phiên mã như gắn mũ 5’, methyl hóa và tạo đuôi poly-A. Hoạt động của protein L quyết định hiệu quả nhân lên của virus trong tế bào nhiễm và có thể ảnh hưởng đến độc lực của một số chủng NDV.
- Ngoài các protein cấu trúc, NDV còn tạo ra protein V thông qua cơ chế chỉnh sửa RNA từ gen P. Protein này được xem là một yếu tố độc lực quan trọng do có khả năng ức chế đáp ứng interferon type I của vật chủ. Thông qua việc can thiệp vào các con đường tín hiệu miễn dịch bẩm sinh, protein V giúp virus né tránh cơ chế kháng virus tự nhiên của tế bào, tạo điều kiện thuận lợi cho quá trình nhân lên và lan truyền của NDV. Ngược lại, vai trò của protein W hiện vẫn chưa được làm sáng tỏ và chưa có đủ bằng chứng để xác định chức năng cụ thể của protein này trong chu trình sống của virus.
3.2. Cơ chế nhân lên và độc lực của virus Newcastle

Hình 5. Sơ đồ quá trình sao chép và nhân lên của virus Newcastle (NDV) (Ganar et al., 2014)
Bước 1. Bám dính vào tế bào cảm nhiễm (Attachment)
NDV xâm nhập chủ yếu qua niêm mạc đường hô hấp và đường tiêu hóa. Protein HN (Hemagglutinin-Neuraminidase) trên bề mặt virus nhận diện và gắn với các thụ thể chứa acid sialic trên tế bào vật chủ. Đây là bước đầu tiên quyết định virus có thể xâm nhập tế bào hay không.
Bước 2. Xâm nhập tế bào (Entry)
Sau khi bám dính, protein F (Fusion protein) được hoạt hóa. Protein F xúc tiến quá trình hòa màng (fusion) giữa màng virus và màng tế bào. Bộ gen RNA của virus được đưa vào bào tương. Ngoài ra, NDV cũng có thể xâm nhập thông qua receptor-mediated endocytosis.
Bước 3. Phiên mã và dịch mã (Transcription & Translation)
Bộ gen NDV là RNA sợi đơn chiều âm (negative-sense RNA). RNA này không thể dịch mã trực tiếp. Phức hợp polymerase gồm P và L sẽ phiên mã RNA virus thành các mRNA chiều dương. Các mRNA được ribosome của tế bào chủ sử dụng để tổng hợp protein virus.
Bước 4. Sao chép bộ gen (Genome Replication)
Khi protein N được tổng hợp đủ số lượng: RNA bộ gen chiều âm được sao chép thành RNA kháng bộ gen (antigenome) chiều dương. Antigenome tiếp tục làm khuôn để tạo ra các bản sao RNA bộ gen mới.
Bước 5. Lắp ráp virion (Assembly)
Các protein N, P và L bao bọc RNA mới tạo thành nucleocapsid. Protein M (Matrix) điều phối quá trình lắp ráp. Nucleocapsid kết hợp với các glycoprotein F và HN tại màng tế bào.
Bước 6. Giải phóng virus (Budding & Release)
Virion trưởng thành được giải phóng khỏi tế bào bằng cơ chế nảy chồi (budding). Virus mang theo lớp vỏ lipid có nguồn gốc từ màng tế bào vật chủ. Các virion mới tiếp tục lây nhiễm sang các tế bào khác.
Cơ chế quyết định độc lực (Virulence) – Protein F quyết định độc lực
- Độc lực của NDV phụ thuộc vào nhiều yếu tố, trong đó quan trọng nhất là khả năng hoạt hóa protein F. Protein F được tổng hợp dưới dạng tiền chất F0 và cần được cắt thành F1 và F2 mới có khả năng hoạt động.
- Các chủng độc lực thấp, vị trí cắt của F chỉ được nhận diện bởi một số protease ngoại bào hiện diện chủ yếu tại đường hô hấp và đường tiêu hóa, do đó virus thường chỉ gây nhiễm khu trú.
- Các chủng độc lực cao, mang vị trí cắt đa kiềm (polybasic cleavage site) có thể được hoạt hóa bởi enzyme furin hiện diện ở nhiều loại mô khác nhau. Điều này cho phép virus nhân lên tại nhiều cơ quan, lan truyền toàn thân và gây bệnh nặng với tỷ lệ chết cao. Bên cạnh protein F, protein HN cũng góp phần quan trọng vào độc lực của NDV thông qua khả năng nhận diện thụ thể, hỗ trợ hòa màng và thúc đẩy sự lan truyền của virus giữa các tế bào. Nhiều nghiên cứu cho thấy sự phối hợp giữa protein F và HN không chỉ quyết định hiệu quả xâm nhập tế bào mà còn ảnh hưởng trực tiếp đến khả năng gây bệnh của virus trên gia cầm.
Tài liệu tham khảo
- Swayne, D. E., Boulianne, M., Logue, C. M., McDougald, L. R., Nair, V., Suarez, D. L., de Wit, S., Grimes, T., Johnson, D., Kromm, M., Prajitno, T. Y., Rubinoff, I., & Zavala, G. (2020). Diseases of Poultry (14th ed.). Wiley-Blackwell.
- Ganar, K., Das, M., Sinha, S., & Kumar, S. (2014). Newcastle disease virus: Current status and our understanding. Virus Research, 184, 71–81. https://doi.org/10.1016/j.virusres.2014.02.016