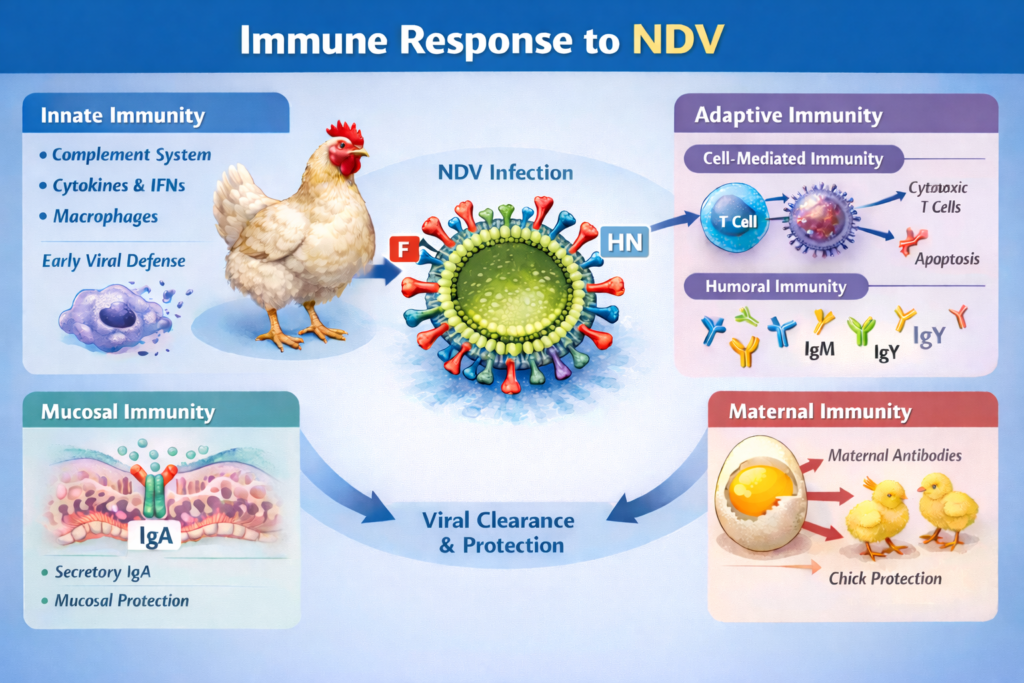
Virus Newcastle (Newcastle disease virus – NDV) là một trong những tác nhân gây bệnh nguy hiểm nhất đối với gia cầm, không chỉ bởi mức độ lây lan nhanh mà còn do khả năng gây bệnh với độc lực rất khác nhau giữa các chủng virus và giữa các loài ký chủ. Một trong những yếu tố quyết định kết cục của nhiễm NDV là khả năng đáp ứng miễn dịch của vật chủ, bao gồm cả miễn dịch bẩm sinh và miễn dịch thích nghi. Hiểu rõ cơ chế đáp ứng miễn dịch đối với NDV không chỉ giúp giải thích sự khác biệt về độc lực và cảm nhiễm giữa các loài gia cầm, mà còn là nền tảng khoa học cho việc thiết kế chiến lược vaccine và kiểm soát bệnh hiệu quả.
1. Tổng quan về đáp ứng miễn dịch đối với NDV
Đáp ứng miễn dịch đối với NDV thay đổi tùy theo chủng virus gây nhiễm và loài ký chủ. Nhiễm NDV do các chủng độc lực thấp (lentogenic) hoặc độc lực trung bình (mesogenic) thường được kiểm soát hiệu quả nhờ sự phối hợp của miễn dịch bẩm sinh và miễn dịch thích nghi của ký chủ. Ngược lại, trong trường hợp các chủng độc lực cao (velogenic), virus có thể nhân lên rất nhanh, “vượt tốc” hệ phòng vệ của ký chủ và nhanh chóng áp đảo các cơ chế bảo vệ, dẫn đến tử vong.
NDV là virus có khả năng lây nhiễm cao và tốc độ nhân lên nhanh. Do đó, để bảo vệ hoàn toàn khỏi nhiễm NDV, ký chủ cần có đáp ứng miễn dịch bẩm sinh mạnh ở giai đoạn sớm, đồng thời phát triển đáp ứng miễn dịch thích nghi hiệu quả và bền vững.
2. Miễn dịch bẩm sinh trong nhiễm NDV
2.1. Vai trò chung của miễn dịch bẩm sinh
Miễn dịch bẩm sinh là phản ứng tức thời của ký chủ đối với nhiễm NDV, có vai trò ức chế sự nhân lên ban đầu của virus và tạo điều kiện cho đáp ứng miễn dịch thích nghi được hình thành. Giai đoạn sớm của nhiễm trùng là thời điểm then chốt quyết định khả năng kiểm soát virus.
NDV xâm nhập ký chủ chủ yếu qua đường hô hấp, nơi virus trước tiên tiếp xúc với các hàng rào phòng vệ bẩm sinh ngoại bào. Các hàng rào này có thể trực tiếp bất hoạt hạt virus hoặc phát tín hiệu thu hút và hoạt hóa các tế bào miễn dịch.
2.2. Hệ bổ thể trong nhiễm NDV
Trong số các cơ chế phòng vệ bẩm sinh ngoại bào, hệ thống bổ thể (C′) đóng vai trò đặc biệt quan trọng. NDV đã được chứng minh có thể bị bất hoạt bởi bổ thể ngay cả khi không có sự hiện diện của kháng thể kháng virus (Welsh, 1977). Ngoài ra, NDV có khả năng hoạt hóa cả ba con đường của hệ bổ thể: cổ điển, lectin và thay thế (Biswas et al., 2012).
Một cơ chế né tránh miễn dịch đáng chú ý của NDV là khả năng thu nhận thụ động các protein điều hòa hoạt hóa bổ thể (RCA) từ tế bào ký chủ, bao gồm CD46 và CD55. Sự hiện diện của các protein này trên bề mặt virion giúp virus tránh bị trung hòa qua bổ thể. Thí nghiệm cho thấy NDV nuôi cấy trên trứng gà có phôi (ECE) không bị trung hòa bởi huyết thanh gà không miễn dịch, nhưng lại bị trung hòa bởi huyết thanh người bình thường, xác nhận rằng các protein RCA hoạt động theo cơ chế đặc hiệu loài (Biswas et al., 2012).
2.3. Cytokine, interferon và các cơ chế bẩm sinh khác
Nhiều nghiên cứu đã chứng minh rằng các cytokine tiền viêm, chemokine, interferon (IFN) type I và II, cùng các protein kháng virus đóng vai trò trung tâm trong đáp ứng miễn dịch bẩm sinh sớm đối với NDV (Ecco et al., 2011; Rue et al., 2011).
Ví dụ, IL-6, MDA-5 và IFIT-5 trong lách gà nhiễm được cảm ứng mạnh bởi chủng NDV độc lực cao chỉ sau 1 ngày nhiễm (Rue et al., 2011). Các nghiên cứu tiếp theo cho thấy gà nhiễm các kiểu gen velogenic khác nhau biểu hiện tải lượng virus và mức độ cytokine/chemokine khác nhau, phản ánh sự khác biệt trong cường độ phản ứng viêm (Hu et al., 2012; Rasoli et al., 2014).
Ngoài ra, NDV còn được chứng minh có khả năng hoạt hóa nhiều cơ chế miễn dịch bẩm sinh khác như:
-
Interferon type I (Elankumaran et al., 2010),
-
Apoptosis (Ravindra et al., 2008; Harrison et al., 2011),
-
Autophagy (Sun et al., 2014).
3. Hệ thống interferon và sự khác biệt giữa các loài gia cầm
Hệ thống interferon (IFN) được xem là cơ chế phòng vệ quan trọng nhất của ký chủ trong nhiễm virus, do khả năng kiểm soát trực tiếp sự nhân lên của virus và điều hòa các thành phần khác của miễn dịch bẩm sinh.
Ở gà, mức cảm ứng IFN yếu có tương quan với hiệu giá virus cao và thời gian thải virus kéo dài; ngược lại, biểu hiện IFN mạnh liên quan đến hiệu giá virus thấp và thời gian thải virus ngắn hơn (Cauthen et al., 2007; Liang et al., 2011).
So sánh giữa các loài cho thấy tế bào gà cảm ứng IFN và các cytokine tiền viêm mạnh hơn so với tế bào vịt (Kang et al., 2016). Hệ quả là gà loại bỏ virus nhanh hơn, với thời gian thải virus trung bình khoảng 3 ngày, trong khi vịt có thể thải virus kéo dài tới 14 ngày. Những khác biệt này cho thấy đáp ứng miễn dịch bẩm sinh của ký chủ là yếu tố quan trọng quyết định sự khác biệt về độc lực NDV giữa gà và vịt (Kang et al., 2016).
4. Miễn dịch qua trung gian tế bào (CMI)
Cả miễn dịch qua trung gian tế bào (cell-mediated immunity – CMI) và miễn dịch dịch thể đều tham gia vào bảo vệ chống NDV. CMI là đáp ứng miễn dịch xuất hiện sớm, có thể được phát hiện chỉ sau 2 – 3 ngày nhiễm khi sử dụng các chủng vaccine sống (Ghumman and Bankowski, 1976; Timms and Alexander, 1977).
Vai trò của CMI trong nhiễm NDV tự nhiên ở gà chưa tiêm phòng vẫn chưa được làm rõ hoàn toàn. Thí nghiệm làm suy giảm tế bào B bằng cyclophosphamide dẫn đến việc không phát hiện được IgY, IgM và IgA, nhưng virus NDV vẫn bị loại bỏ (Lam and Hao, 1987). Tương tự, gà đã cắt túi Fabricius nhưng được tiêm vaccine sống vẫn được bảo vệ hoàn toàn trước thử thách bằng NDV độc lực cao, dù đáp ứng dịch thể rất yếu (Marino and Hanson, 1987).
Những kết quả này cho thấy CMI đóng vai trò quan trọng trong quá trình loại bỏ virus, nhưng chỉ riêng CMI có thể không đủ để bảo vệ chống lại nhiễm NDV độc lực cao (Reynolds and Maraqa, 2000).
5. Miễn dịch dịch thể và kháng thể bảo hộ
Miễn dịch dịch thể đóng vai trò chủ yếu trong việc loại bỏ virus và bảo vệ chống tái nhiễm. Việc truyền thụ động immunoglobulin từ gà đã tiêm phòng sang gà chưa tiêm phòng có thể tạo ra bảo vệ chống thử thách NDV độc lực, chứng minh vai trò trực tiếp của kháng thể trong bảo hộ.
Kháng thể IgM huyết thanh có thể phát hiện từ ngày thứ 4 sau nhiễm, trong khi IgY xuất hiện trong khoảng 6 – 10 ngày và đạt đỉnh vào khoảng 3 – 4 tuần. Mặc dù kháng thể có thể tồn tại đến một năm trong máu của chim đã nhiễm, hiệu giá kháng thể này đôi khi không đủ để bảo vệ chống lại các chủng NDV độc lực cao.
Đáp ứng miễn dịch bảo hộ đối với NDV thường được đánh giá bằng thử nghiệm HI, do hiệu giá HI thường song hành với hiệu giá kháng thể trung hòa. Tuy nhiên, một số nghiên cứu cho thấy hiệu giá HI không luôn tương quan trực tiếp với mức độ kháng bệnh của gà (Gough and Alexander, 1973; Holmes, 1979). Vì vậy, hiệu giá kháng thể trung hòa virus nên được xác định bằng xét nghiệm trung hòa virus, thay vì chỉ dựa vào HI.
6. Vai trò của protein F và HN trong miễn dịch bảo hộ
Các kháng thể bảo hộ đối với NDV chủ yếu hướng vào hai glycoprotein bề mặt là F và HN, do đây là các protein dễ tiếp cận trên virion và trên tế bào nhiễm.
Kháng thể kháng HN có khả năng ức chế sự bám dính của virus vào tế bào, nhưng chỉ hiệu quả khi không có dung hợp tế bào và virus lan truyền chủ yếu qua các virion được giải phóng. Ngược lại, kháng thể kháng F có khả năng ngăn chặn sự lan truyền nhiễm trùng thông qua dung hợp tế bào, cũng như trong các tế bào không dung hợp. Nhiều nghiên cứu cho thấy protein F là yếu tố đóng góp quan trọng nhất trong cảm ứng kháng thể trung hòa và miễn dịch bảo hộ, tiếp theo là protein HN, cung cấp mức bảo vệ một phần (Kim et al., 2013).
7. Miễn dịch thụ động và miễn dịch niêm mạc
Miễn dịch thụ động được truyền từ gà mẹ sang gà con thông qua lòng đỏ trứng (Heller et al., 1977). Các kháng thể mẹ này bảo vệ gà con trong khoảng hai tuần đầu đời, nhưng đồng thời có thể trung hòa virus vaccine và làm giảm hiệu quả tiêm phòng (Awang et al., 1992). Mức kháng thể mẹ ở gà con 1 ngày tuổi có tương quan trực tiếp với hiệu giá kháng thể của đàn bố mẹ.
Miễn dịch niêm mạc, đặc trưng bởi sự sản xuất IgA tiết, đóng vai trò quan trọng trong bảo vệ chống NDV bằng cách hạn chế sự nhân lên ban đầu tại vị trí xâm nhập và giảm thải virus (Holmes, 1979). Vaccine virus sống kích thích mạnh đáp ứng IgA tại niêm mạc đường hô hấp, tiêu hóa và tuyến Harder của mắt, trong khi vaccine tiêm đường toàn thân hiếm khi tạo đáp ứng IgA tại chỗ (Parry and Aitken, 1977; Powell et al., 1979). IgA tiết đặc biệt quan trọng trong bảo vệ đường hô hấp trên – nơi IgG huyết thanh khó tiếp cận hiệu quả.
Tóm lại, mặc dù vẫn chưa xác định được nhánh miễn dịch nào hay glycoprotein vỏ nào quan trọng nhất trong bảo vệ chống Newcastle disease, các bằng chứng hiện có cho thấy chỉ một đáp ứng miễn dịch mạnh, toàn diện và phối hợp – bao gồm miễn dịch bẩm sinh, miễn dịch tế bào, miễn dịch dịch thể và miễn dịch niêm mạc – mới có thể chấm dứt hoàn toàn sự nhân lên của NDV và tạo bảo vệ lâu dài. Điều này nhấn mạnh tầm quan trọng của các vaccine có khả năng kích thích đồng thời nhiều nhánh miễn dịch, đặc biệt là miễn dịch niêm mạc và miễn dịch tế bào, trong chiến lược kiểm soát NDV hiện nay.
