Mở đầu
- Quá trình sinh sản ở động vật nói chung bao gồm nhiều giai đoạn phát triển và chức năng riêng biệt. Đối với chim trống, các giai đoạn này trải dài từ hình thành hoàn thiện cơ quan sinh dục, sinh tinh trùng, đến biểu hiện hành vi giao phối và cuối cùng là phóng tinh. Cách nhìn nhận theo chuỗi sự kiện này cho phép chúng ta hiểu rõ rằng hệ sinh dục chim trống đã phần lớn được hình thành trước khi chim nở (dù chỉ hoạt động đầy đủ khi chim trưởng thành). Đặc biệt, quá trình sản sinh tinh trùng (spermatogenesis) không bị “đóng khung” bởi tuổi tác mà tùy thuộc vào mức độ tăng sinh và biệt hóa tế bào tinh hoàn dưới ảnh hưởng của hormone hướng sinh dục (gonadotropin). Mặt khác, các androgen (hormone sinh dục đực) là cần thiết cho hoạt động sinh sản, sự xuất hiện đặc tính sinh dục thứ cấp và hành vi giao phối ở con trống – nhưng nếu xuất hiện quá sớm ở giai đoạn trước dậy thì có thể gây tác động bất lợi lên hệ miễn dịch và mô liên kết.
- Bài viết này sẽ tập trung trình bày cấu trúc giải phẫu và sự phát triển phôi thai của hệ sinh dục chim trống. Đây là những nền tảng quan trọng giúp các bác sĩ thú y, sinh viên chăn nuôi – thú y, nhà nghiên cứu và người chăn nuôi hiểu thấu đáo về sinh lý sinh sản gia cầm cũng như cơ chế xác định giới tính độc đáo ở loài chim (ZZ/ZW). Đồng thời, chúng ta sẽ tìm hiểu vai trò của gen DMRT1 trong việc khởi động con đường tạo tinh hoàn gà trống.
Cấu trúc giải phẫu hệ sinh dục chim trống
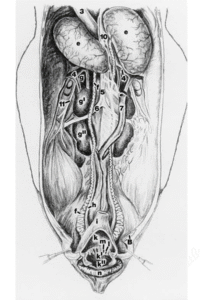
Hình 1: Cấu trúc giải phẫu của thành cơ thể mặt lưng gà trống.
Hai tinh hoàn (e) nằm ở phía trước thùy đầu của thận (g). Các ống dẫn tinh (f) chạy song song với niệu quản (h) hướng về phía huyệt (k, k′, k″), và cuối cùng mở ra (l) vào phần tiết niệu của huyệt (k′).
Chú thích:
b. xương mu; e. tinh hoàn; f. ống dẫn tinh (ductus deferens); g, g′, g″: lần lượt là các thùy đầu, giữa và đuôi của thận; h. niệu quản; i. ruột già (đại tràng); k. phần phân (coprodeum) của huyệt; k′. phần tiết niệu (urodeum) của huyệt; k″. phần trực tràng (proctodeum) của huyệt; l. lỗ mở của ống dẫn tinh trái; m. lỗ mở của niệu quản trái; n. hậu môn. Nguồn: (Nickel và cộng sự 1977).
- Ở gà, không có dương vật thật sự như các loài thú, mà chỉ có một nhú nhỏ (papilla) trong lỗ huyệt thực hiện chức năng tương tự dương vật. Thông thường tinh hoàn bên trái lớn hơn bên phải và kích thước tăng lên rõ rệt trong mùa sinh sản khi chim trống giao phối tích cực.
Tinh hoàn (Testis)
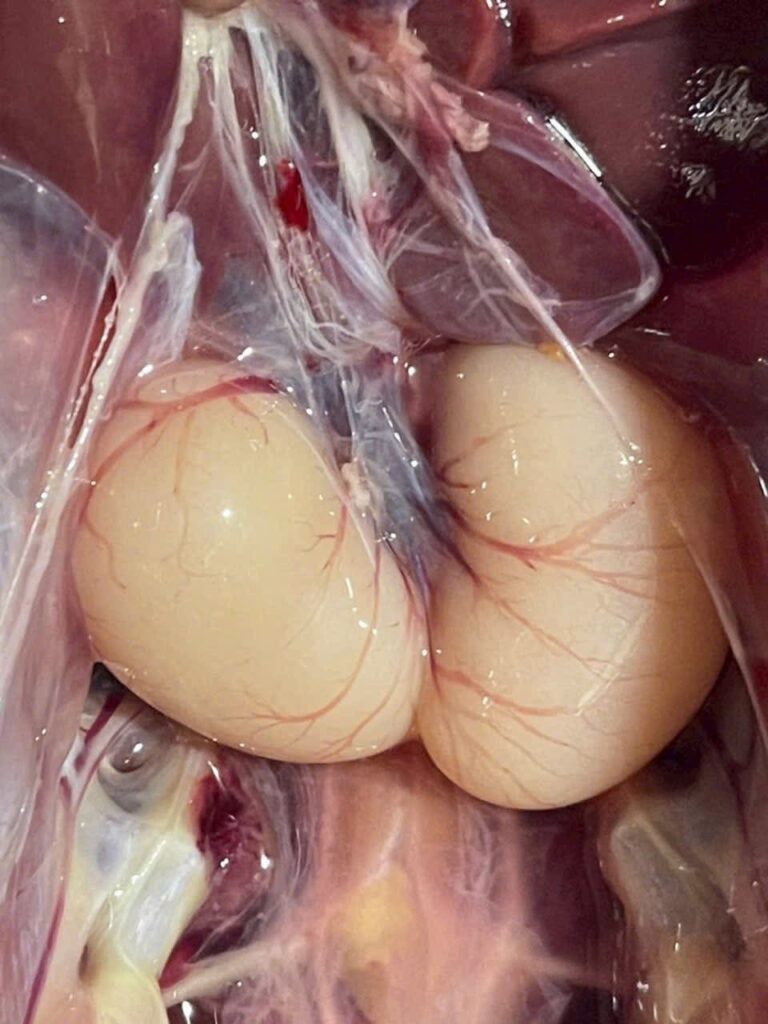
- Tinh hoàn của chim trống là cơ quan sinh dục chính, nằm trong xoang bụng sát thận và được cố định vào thành lưng cơ thể bằng mạc treo tinh hoàn (mesorchium) – một nếp phúc mạc vừa có vai trò treo giữ tinh hoàn, vừa là đường dẫn mạch máu và thần kinh nuôi tinh hoàn. Mỗi tinh hoàn có cấu tạo gồm hai loại mô chính: mô kẽ (tissue interstitial) và biểu mô ống sinh tinh. Mô kẽ chứa hệ thống mạch máu, mạch bạch huyết, dây thần kinh cùng các tế bào nội tiết Leydig và các tế bào quanh ống sinh tinh. Bao quanh mô kẽ là hàng ngàn ống sinh tinh cuộn xoắn; lớp biểu mô lót lòng ống sinh tinh được tạo thành từ các tế bào Sertoli kết nối chặt với nhau, chia biểu mô thành hai vùng (vùng đáy và vùng lòng ống). Bên trong biểu mô này là các tế bào mầm sinh dục (germ cells) đang phát triển liên tục qua nhiều giai đoạn kế tiếp, được sắp xếp theo hình xoắn ốc dọc suốt chiều dài ống sinh tinh.
- Đa số các loài chim có hiện tượng tinh hoàn trái lớn hơn tinh hoàn phải. Sự bất đối xứng này được cho là kết quả của quá trình chọn lọc tiến hóa nhằm phù hợp với cơ quan sinh dục cái chỉ phát triển một bên (buồng trứng trái) và/hoặc giúp tối ưu hóa khả năng bay. Ngoài ra, kích thước tinh hoàn thường tỉ lệ thuận với khối lượng cơ thể; những loài chim có cạnh tranh tinh trùng cao (ví dụ chim có tập tính giao phối đa bạn tình) thì tinh hoàn có xu hướng phát triển to hơn so với loài một vợ một chồng. Ở gà trống nhà, tinh hoàn cũng tuân theo các nguyên tắc chung trên, nhưng nghiên cứu cho thấy trong các giống gà chuyên thịt (broiler) hiện đại, khối lượng hai tinh hoàn hầu như không chênh lệch rõ rệt trong suốt giai đoạn từ 2 đến 50 tuần tuổi. Đáng chú ý, sau khi gà trống được kích thích ánh sáng để bước vào giai đoạn sinh sản (khoảng 18 tuần tuổi), trọng lượng mỗi tinh hoàn tăng vọt từ ~ 0,4 g lên ~ 28 g chỉ trong vòng 10 tuần, rồi sau đó giảm dần xuống khoảng 15 g vào tuần 42; sự thoái triển này có thể liên quan đến việc giảm nồng độ hormone FSH trong máu. Điều này cho thấy tinh hoàn chim trống có khả năng biến đổi kích thước rất lớn khi bước vào mùa sinh sản, nhằm tăng cường sản xuất tinh trùng, rồi giảm bớt khi nhu cầu sinh sản suy giảm.
Hệ thống ống dẫn tinh
- Hệ sinh dục chim trống không có tử cung hay âm đạo, mà bao gồm hệ thống ống dẫn tinh đưa tinh trùng từ tinh hoàn ra ngoài cơ thể. Hệ thống ống dẫn tinh của chim trống (còn gọi là ống sinh dục phụ thuộc, excurrent ducts) gồm các cấu phần chính: ống lưới tinh hoàn (rete testis), ống xuất (efferent ducts), ống nối (connecting ducts), ống mào tinh (epididymal ducts) và ống dẫn tinh (vas deferens). Toàn bộ các ống này đều có nguồn gốc từ mesonephros (trung thận phôi) trong quá trình phát triển phôi thai.
- Mào tinh ở các loài chim rất nhỏ và đơn giản hơn so với động vật có vú. Mào tinh nằm dọc theo bờ lưng – giữa của tinh hoàn (vùng rốn tinh hoàn) và thực chất là một đoạn ống ngắn kết nối giữa các ống xuất đi ra từ tinh hoàn với ống dẫn tinh. Ở một số loài (như gà, chim cút, gà sao), các ống xuất chiếm tỉ lệ thể tích lớn nhất của mào tinh, trong khi ống mào tinh chỉ chiếm khoảng 2,5–10% thể tích mào tinh ở gà nhưng có thể gấp 10 lần ở các loài chim chạy (như đà điểu).
- Ống dẫn tinh (ductus deferens) là đoạn ống dài nhất, nối tiếp từ ống mào tinh và chạy ngoằn ngoèo song song với niệu quản xuống tới cloaca. Đường kính lòng ống dẫn tinh tăng dần (khoảng gấp 3 lần từ đoạn đầu gần tinh hoàn đến đoạn cuối gần cloaca). Thành ống dẫn tinh có lớp cơ trơn và mô liên kết rất dày bao quanh, giúp tạo nhu động mạnh để đẩy tinh dịch ra ngoài khi phóng tinh. Đặc biệt, hệ thống mao mạch máu bao quanh các ống dẫn tinh ở chim trống rất phong phú, nhất là từ đoạn ống xuất đến ống dẫn tinh, giúp nuôi dưỡng và duy trì hoạt động của các ống này. Nhờ cấu trúc cuộn xoắn, tổng chiều dài của ống dẫn tinh ở chim trống trưởng thành có thể gấp bốn lần khoảng cách thẳng từ mào tinh đến lỗ huyệt – một đặc điểm cho thấy sự sắp xếp rất chặt chẽ để tiết kiệm không gian cơ thể mà vẫn đảm bảo độ dài ống cần thiết cho việc lưu trữ và vận chuyển tinh trùng.
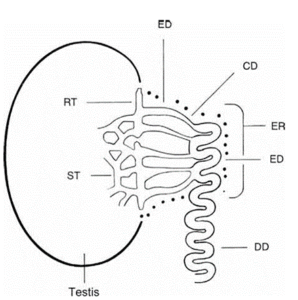
Hình 2: Sơ đồ minh họa hệ thống ống dẫn xuất của tinh hoàn.
ST: ống sinh tinh (seminiferous tubules); RT: lưới tinh hoàn (rete testis); ED: ống xuất (efferent duct); CD: ống nối (connecting duct); ER: vùng mào tinh (epididymal region); ED: ống mào tinh (epididymal duct); DD: ống dẫn tinh (deferent duct). Nguồn: (Lake, 1981.)
Các cơ quan phụ trợ và cơ chế giao phối
- Hệ sinh dục phụ của chim trống còn bao gồm một số cơ quan phụ trợ đặc thù nằm gần vùng cloaca, đóng vai trò hỗ trợ cho quá trình giao phối và phóng tinh. Các cơ quan này bao gồm: thể mạch cận huyệt, tuyến lưng của proctodeum và các nếp gấp bạch huyết trong thành lỗ huyệt. Những cấu trúc phụ trợ này nằm sát ngay bên hoặc là một phần tích hợp của cloaca – tức cơ quan phía cuối đường tiêu hóa – sinh dục của loài chim. Cụ thể, thể mạch cận huyệt nằm cạnh túi chứa của ống dẫn tinh ở thành cloaca, còn các nếp gấp bạch huyết thì gắn liền vào thành proctodeum (đoạn sau cùng của cloaca). Khi chim trống giao phối, thể mạch và nếp gấp bạch huyết sẽ căng phồng chứa máu và dịch bạch huyết, góp phần làm lộ ra cơ quan giao cấu để dẫn truyền tinh dịch.
- Đa số các loài chim không có cơ quan giao phối dạng dương vật xâm nhập như động vật có vú. Thống kê cho thấy chỉ khoảng 3% các loài chim (chủ yếu là các loài chim nguyên thủy không biết bay thuộc bộ Chim chạy như đà điểu, và nhóm Thủy cầm như vịt, ngỗng) là có dương vật “thực thụ” có thể đưa vào cơ quan sinh dục con cái khi giao phối. Ngược lại, ở hầu hết loài chim khác – bao gồm gà nhà và các giống gia cầm – cơ quan giao phối của chim trống là loại không xâm nhập (non-intromittent phallus). Nghĩa là gà trống không đưa một “dương vật” nào vào trong gà mái; tinh trùng được truyền sang cho gà mái thông qua “nụ hôn cloacal” khi giao phối. Trong khoảnh khắc “nụ hôn” này, lỗ huyệt của con trống và con mái áp sát vào nhau trong vài giây, và tinh dịch từ con trống được phóng trực tiếp sang con mái.
- Mặc dù cơ quan giao phối của gà trống rất nhỏ và không thực sự xâm nhập, nó vẫn đóng vai trò quan trọng trong việc định hướng dòng tinh dịch vào đúng lỗ huyệt con mái. Khi bắt đầu hành vi giao phối (hoặc thậm chí khi được kích thích nhân tạo bằng cách xoa bóp), cơ quan giao phối không xâm nhập của gà trống sẽ phồng to lên nhờ các mô cương chứa bạch huyết (tương tự cơ chế cương máu) và lộn ra ngoài qua lỗ huyệt ngay trước lúc phóng tinh. Nhờ vậy, đầu ống dẫn tinh của gà trống áp sát trực tiếp với lỗ huyệt gà mái, đảm bảo tinh dịch được chuyển giao hiệu quả. Sau khi phóng tinh, cơ quan này nhanh chóng thu lại vào bên trong cloaca.
Sự phát triển phôi và xác định giới tính ở chim
Hình thành hệ sinh dục ở phôi chim trống
- Hệ sinh dục của chim trống trưởng thành bắt nguồn từ hai cơ quan phôi ban đầu: tuyến sinh dục nguyên thủy và trung thận. Vào đầu thời kỳ phôi, mesonephros hình thành trước, sau đó tuyến sinh dục mới phát triển từ lớp biểu mô thân thể xoang (coelomic epithelium) nằm ở mặt bụng-trung gian của mesonephros. Trong quá trình phát triển phôi gà, đã có sự xuất hiện tuần tự của ba hệ cơ quan bài tiết dạng đôi theo thứ tự trước – sau:
- Tiền thận (pronephros) – cặp thận đầu tiên ở vùng cổ phôi.
- Trung thận (mesonephros) – cặp thận giữa, thay thế tiền thận và hoạt động tạm thời trong giai đoạn phôi giữa.
- Hậu thận (metanephros) – cặp thận sau, sẽ phát triển thành thận trưởng thành thực sự ở giai đoạn muộn.
- Ở phôi gà, tiền thận thoái triển rất sớm: cơ quan này biến mất vào khoảng ngày 4 của quá trình ấp trứng. Tuy nhiên, ống pronephric (còn gọi là ống Wolffian ở giai đoạn tiền thận) vẫn tồn tại và giữ vai trò quan trọng cho việc hình thành hệ sinh dục về sau. Cụ thể, ống pronephric kéo dài dọc cơ thể phôi sẽ cảm ứng sự hình thành các ống của trung thận (mesonephros), đồng thời cảm ứng luôn sự xuất hiện của ống Müller (Müllerian duct – tiền thân của ống dẫn trứng ở con cái) bên cạnh nó. Ống pronephric này cũng tạm thời nối trung thận với cloaca để dẫn nước tiểu phôi ra ngoài, và cuối cùng chính nó sẽ trở thành ống dẫn tinh (deferent duct) ở con trống trưởng thành.
- Một cột mốc mấu chốt trong quá trình phát sinh hệ sinh dục là thời điểm tuyến sinh dục nguyên thủy biệt hóa thành tinh hoàn hoặc buồng trứng. Trước mốc này, phôi có tuyến sinh dục lưỡng năng (bipotential gonad) – tức tuyến sinh dục chưa quyết định giới tính, có khả năng phát triển theo hướng tinh hoàn hoặc buồng trứng tùy thuộc vào tín hiệu biệt hóa nhận được. Đồng thời, ở giai đoạn lưỡng năng này, cả hai cặp ống dẫn phôi đều cùng tồn tại song song trong cơ thể phôi: ống Muller (tiền thân của ống dẫn trứng cái) và ống Wolff (tiền thân của ống dẫn tinh đực).
- Về sự hình thành ban đầu của tuyến sinh dục, các tế bào mầm nguyên thủy (primordial germ cells, PGCs) xuất hiện tách biệt khá xa vị trí tương lai của tuyến sinh dục. Chúng có nguồn gốc từ lớp nội bì phôi, cụ thể là ở ranh giới giữa vùng đục (area opaca) và vùng trong suốt (area pellucida) của phôi vị (blastoderm) giai đoạn sớm. Sau khi hình thành, các tế bào mầm nguyên thủy xâm nhập vào hệ tuần hoàn phôi và di chuyển theo dòng máu đi khắp cơ thể. Đến khoảng ngày thứ 2 – 3 của phôi, chúng thoát khỏi mạch máu và định cư tại gờ mầm (germinal ridge) – là dải biểu mô nằm dọc theo mặt lưng của trung thận, nơi tuyến sinh dục đang hình thành. Khi mới hình thành, tuyến sinh dục chưa biệt hóa bao gồm hai vùng cấu trúc chính: các dây tế bào rete ở phần đầu (phía trước) và những dải dây sinh dục nguyên phát ở phần giữa của tuyến sinh dục (theo mô tả của Romanoff, 1960). Lúc này, tuyến sinh dục phôi vẫn giữ tính lưỡng năng, nghĩa là còn khả năng phát triển thành tinh hoàn hoặc buồng trứng tùy theo tín hiệu biệt hóa sẽ nhận được về sau.
Xác định giới tính ở chim – vai trò của DMRT1
- Cơ chế xác định giới tính ở chim có những điểm khác biệt cơ bản so với động vật có vú. Ở các loài thú (ví dụ như người, động vật có vú khác), con đực có cặp nhiễm sắc thể giới tính XY, và sự hiện diện của gen SRY trên nhiễm sắc thể Y chính là tín hiệu khởi đầu quá trình hình thành tinh hoàn. Cụ thể, SRY kích hoạt con đường tạo tinh hoàn thông qua việc kích thích gene Sox9, dẫn đến biệt hóa tế bào Sertoli và phát triển tinh hoàn ở phôi đực. Ngược lại, ở loài chim, con trống lại có cặp nhiễm sắc thể giới tính ZZ (đồng giao tử – homogametic), còn con mái là ZW (dị giao tử – heterogametic). Điều này có nghĩa là chim trống không có nhiễm sắc thể Y, vì vậy cơ chế xác định giới tính của chim không thể giống như kiểu SRY của động vật có vú được.
Hai giả thuyết lớn đã được đặt ra để giải thích điều gì quyết định giới tính ở loài chim:
-
- Giả thuyết W quyết định giới cái: Giả thuyết này cho rằng chính sự hiện diện của nhiễm sắc thể W sẽ thúc đẩy phôi phát triển thành con cái (chim mái). Tuy nhiên, thí nghiệm ép phôi gà trống biểu hiện một gene từ nhiễm sắc thể W (gene HINTW – histidine triad nucleotide binding protein) lại không làm phôi đực chuyển thành buồng trứng như dự đoán. Hơn nữa, người ta nhận thấy nhiễm sắc thể W của gà chứa rất ít gene chức năng. Những bằng chứng này cho thấy chỉ riêng sự có mặt của W có lẽ chưa đủ để quyết định tạo thành giới cái.
- Giả thuyết “liều lượng Z” (Z dosage): Giả thuyết này được ủng hộ nhiều hơn, cho rằng ở loài chim, việc hình thành tinh hoàn hay buồng trứng phụ thuộc vào số lượng bản sao của một gene nằm trên nhiễm sắc thể Z. Cụ thể, nếu có đủ hai bản sao gene trên Z (tức kiểu gen ZZ của chim trống), gene này sẽ được biểu hiện ở mức cao đủ để thúc đẩy tuyến sinh dục phát triển theo hướng tinh hoàn. Ngược lại, phôi chim mái chỉ có một bản sao (ZW) nên không đạt “ngưỡng” để kích hoạt con đường tạo tinh hoàn, do đó sẽ mặc định phát triển thành buồng trứng. Ứng cử viên quan trọng nhất cho vai trò gene “cảm ứng tinh hoàn” trên nhiễm sắc thể Z này chính là gene DMRT1 – một gene mã hóa yếu tố phiên mã dạng zinc-finger. Gene DMRT1 nằm trên nhiễm sắc thể Z và không có trên W. Các thí nghiệm giảm biểu hiện DMRT1 ở phôi gà trống (ZZ) bằng kỹ thuật RNA can thiệp đã khiến tuyến sinh dục phôi trống bị nữ hóa, tức phôi ZZ nhưng lại hình thành buồng trứng thay vì tinh hoàn. Kết quả này là bằng chứng mạnh mẽ ủng hộ thuyết liều lượng Z, khẳng định rằng DMRT1 giữ vai trò then chốt quyết định sự hình thành tinh hoàn ở chim.
Biệt hóa tinh hoàn và phát triển đường sinh dục đực
- Ở phôi gà, quá trình tuyến sinh dục lưỡng năng biệt hóa thành tinh hoàn hoặc buồng trứng diễn ra khá sớm, vào khoảng 6,5 – 7 ngày ấp (tương đương giai đoạn 6 – 7 ngày phát triển phôi). Trong trường hợp phôi mang cặp nhiễm sắc thể ZZ (phôi trống) và nhận được tín hiệu DMRT1 liều cao như trình bày ở trên, tuyến sinh dục sẽ biệt hóa thành tinh hoàn. Dấu hiệu mô học sớm nhất của sự hình thành tinh hoàn ở phôi là: các tế bào tại vùng tủy tuyến sinh dục (medulla) tập trung lại và cô đặc dần để tạo thành những tế bào Sertoli đầu tiên – đây chính là dòng tế bào chuyên biệt đầu tiên xuất hiện trong tinh hoàn đang hình thành. Khi quá trình biệt hóa tiến triển, tinh hoàn phôi dần có những đặc điểm vi thể riêng có thể nhận diện được: lớp biểu mô mầm phủ bề mặt tuyến sinh dục dày lên rồi ngừng phân chia; lớp bao trắng tinh hoàn (tunica albuginea) hình thành dày hơn; đặc biệt không có các dây sinh dục thứ cấp ở phần vỏ (cortex), thay vào đó trong phần tủy có các dây sinh dục nguyên phát chứa đầy tế bào mầm nguyên thủy – chính những dây tế bào này sẽ phát triển thành ống sinh tinh về sau. Nói cách khác, cấu trúc ống sinh tinh của tinh hoàn đã được “đặt nền móng” từ rất sớm trong phôi, thông qua việc hình thành các dây sinh dục nguyên phát tập trung nhiều tế bào mầm.
- Về mặt phân tử, quá trình một tuyến sinh dục lưỡng năng biệt hóa thành tinh hoàn cũng đi kèm với nhiều thay đổi sinh hóa trong mô. Các nghiên cứu cho thấy sự gia tăng đáng kể của nồng độ nucleotide vòng (cAMP) và tổng hợp protein xảy ra bên trong tuyến sinh dục trong giai đoạn phôi chuyển sang hướng tinh hoàn. Bên cạnh đó, kiểu sản xuất hormone steroid sinh dục của tuyến sinh dục cũng thay đổi – từ chỗ trung tính chuyển sang khuynh hướng tạo androgen nhiều hơn, phù hợp với việc hình thành tinh hoàn thay vì buồng trứng. Tất cả những biến đổi này đều diễn ra trước khi trục hạ đồi – tuyến yên – sinh dục (HPG) của phôi hoạt động hoàn chỉnh. Ở phôi gà, trục HPG chỉ thực sự vận hành vào khoảng ngày 13,5 của ấp trứng, tức là sau khi tinh hoàn đã bắt đầu biệt hóa được một thời gian khá dài. Điều này nhấn mạnh rằng sự định hình tinh hoàn ở phôi chủ yếu do yếu tố nội tại từ nhiễm sắc thể giới tính, chứ chưa chịu ảnh hưởng điều hòa của hormone hướng sinh dục từ não phôi.
- Song song với việc tinh hoàn hình thành, ống dẫn phôi Mullerian (ống Müller) ở phôi đực bắt đầu thoái hóa dần vì không còn cần thiết nữa. Sự thoái hóa này diễn ra theo chiều từ đuôi phôi hướng về đầu (từ phía gần cloaca tiến dần lên) và được kích hoạt bởi hormone AMH (Anti-Müllerian Hormone) do các tế bào Sertoli sơ khai tiết ra trong tinh hoàn mới hình thành. AMH (còn gọi là Müllerian Inhibiting Substance) là một glycoprotein có trọng lượng khoảng 140 kDa (dạng dimer ~ 70 kDa mỗi monomer) thuộc họ TGF-β, được sản xuất bởi các tiền thân tế bào Sertoli nằm trong dây sinh dục nguyên phát của tinh hoàn phôi. Gen mã hóa AMH hiện diện ở cả nhiễm sắc thể Z và W, do đó cả phôi đực lẫn phôi cái đều có AMH gene, nhưng mức biểu hiện AMH ở phôi đực cao hơn nhiều lần so với phôi cái trong giai đoạn tuyến sinh dục đang biệt hóa. AMH gắn vào các thụ thể trên tế bào ống Müllerian khiến các ống này dần dần tiêu biến, ngăn không cho ống dẫn trứng hình thành ở con đực, qua đó duy trì sự phát triển theo con đường giới đực. Thú vị là, phôi đực sẽ chỉ thoái hóa hoàn toàn ống Müllerian nếu nồng độ estrogen trong máu phôi không quá cao. Thí nghiệm cho thấy việc đưa estrogen hoặc chất giống estrogen vào phôi gà trống có thể cản trở tác dụng của AMH, làm ống Muller không thoái triển như bình thường. Người ta cũng tìm thấy bằng chứng rằng chính AMH có khả năng ức chế enzyme aromatase – enzyme chuyển androgen thành estrogen, từ đó giảm sự hình thành estrogen tại chỗ trong tuyến sinh dục phôi đực. Cơ chế này giúp đảm bảo môi trường nội tiết “đực” cho phôi gà trống, tránh sự can thiệp của hormone “cái” estrogen trong giai đoạn nhạy cảm của việc xác định giới tính.
- Sau khi các ống Mullerian bị triệt tiêu, phôi chim trống vẫn cần tái cấu trúc lại hệ thống ống Wolffian và trung thận để hình thành nên ống dẫn tinh hoàn chỉnh. Như đã đề cập, ống Wolffian nguyên thủy chính là ống pronephric còn sót lại từ tiền thận, kéo dài dọc cơ thể phôi và tạm thời nối trung thận với cloaca. Đến giai đoạn giữa của thời kỳ ấp (khoảng ngày 10 – 12 ở phôi gà), khi hậu thận bắt đầu hoạt động đảm nhiệm chức năng bài tiết, thì trung thận (mesonephros) bắt đầu thoái triển dần. Kích thước khối trung thận giảm rõ rệt, trừ phần trung thận nằm áp sát ngay tinh hoàn đang phát triển – vùng này được giữ lại và sẽ được “tận dụng” để hình thành các ống sinh dục cho con trống. Trong 1/3 cuối của thời kỳ ấp, một phần các ống nhỏ của trung thận bắt đầu chuyển dạng để trở thành các ống dẫn sinh dục của con trống. Quá trình này diễn ra dưới tác động của androgen do các tế bào Leydig của tinh hoàn phôi tiết ra, và thường khởi phát ngay sau thời điểm nồng độ testosterone trong máu phôi đạt đỉnh (phôi gà đạt đỉnh testosterone khoảng ngày 14 – 16 của ấp trứng). Những thay đổi vi thể bao gồm: các tiểu cầu thận (cầu thận) của trung thận gần vùng nối với rete testis dần thoái hóa và nhập lại; biểu mô nang Bowman của cầu thận biệt hóa thành biểu mô trụ đơn, trở thành lớp lót cho đoạn đầu ống xuất từ tinh hoàn. Các đoạn ống trung thận phía xa hơn được định hướng thành các ống xuất đoạn xa nối tiếp hệ thống ống sinh tinh, và những ống nối (connecting tubules) của trung thận biến thành các ống nối thực thụ của hệ sinh dục. Đặc biệt, toàn bộ ống Wolffian vốn gắn liền với trung thận nay cũng đổi vai trò: phần gần trung thận của ống Wolffian trở thành ống mào tinh, còn đoạn xa của nó (dẫn tới cloaca) thì trở thành ống dẫn tinh hoàn chỉnh. Nói cách khác, trung thận và ống Wolffian đã được “tái sử dụng” có mục đích để hình thành nên mào tinh và ống dẫn tinh cho chim trống.
- Quá trình biến đổi trung thận thành hệ thống ống sinh dục đực ở loài chim diễn ra khá dài và phức tạp. Ở gà, ngay cả sau khi nở, quá trình này vẫn chưa kết thúc: cần thêm khoảng 8 – 10 tuần hậu khai sinh để các ống dẫn tinh hoàn thiện cấu trúc cuối cùng. Trong thời gian này, nồng độ testosterone trong máu gà trống con được duy trì ở mức tương đối thấp (chỉ khoảng 12 – 13% so với mức đỉnh khi trưởng thành), đủ để hỗ trợ sự tiếp tục hoàn thiện ống sinh dục mà không gây kích thích sinh tinh sớm. Các dây rete trong tinh hoàn (liên kết ống sinh tinh với ống xuất) chỉ bắt đầu biệt hóa vào sát thời điểm gà nở và hoàn tất vào khoảng 5 tuần tuổi sau khi nở. Bên cạnh đó, các ống mào tinh và ống dẫn tinh vẫn tiếp tục dài ra do uốn khúc thêm trong suốt giai đoạn gà trưởng thành về sinh dục. Nhờ sự uốn khúc này mà ống dẫn tinh đạt được chiều dài tối ưu (như đã đề cập, có thể gấp 4 lần chiều dài thẳng từ tinh hoàn đến cloaca), đảm bảo khả năng lưu trữ và vận chuyển tinh trùng hiệu quả khi gà trống bước vào mùa sinh sản.
Kết luận
- Trên đây là cái nhìn tổng quan về cấu trúc và sự phát triển phôi thai của hệ sinh dục chim trống – từ đặc điểm giải phẫu các cơ quan sinh sản đến cơ chế biệt hóa giới tính và hình thành tinh hoàn trong phôi. Có thể thấy, hệ sinh dục chim trống có nhiều nét độc đáo so với các loài thú: tinh hoàn nằm trong cơ thể, thường bên trái lớn hơn bên phải; không có dương vật thực sự (trừ một số loài đặc thù) mà giao phối bằng áp cloaca; giới tính được xác định theo cơ chế ZZ/ZW thay vì XX/XY, trong đó gene DMRT1 trên nhiễm sắc thể Z đóng vai trò quyết định kích hoạt con đường hình thành tinh hoàn. Sự phối hợp nhịp nhàng giữa yếu tố di truyền (nhiễm sắc thể giới tính, DMRT1) và yếu tố nội tiết (hormone như AMH, androgen) trong quá trình phát triển phôi đã dẫn đến việc hình thành nên hệ thống sinh sản hoàn chỉnh ở chim trống trưởng thành.
- Việc hiểu rõ những kiến thức nền tảng này không chỉ giúp ích cho các nhà nghiên cứu và sinh viên trong lĩnh vực sinh lý sinh sản gia cầm, mà còn có ý nghĩa thực tiễn đối với bác sĩ thú y và người chăn nuôi. Nắm vững cấu tạo cơ quan sinh sản và cơ chế xác định giới tính ở loài chim sẽ hỗ trợ chẩn đoán và xử lý các vấn đề sinh sản (như rối loạn phát triển giới tính, vô sinh ở chim trống), cũng như tối ưu hóa quy trình chọn giống và nhân giống trong chăn nuôi gia cầm quy mô lớn. Phần 2 của chủ đề “Sinh sản ở chim trống” sẽ tiếp tục đi sâu vào sinh lý và điều hòa nội tiết quá trình sinh sản, bao gồm hoạt động sinh tinh, các hormone sinh dục và hành vi giao phối ở chim trống trưởng thành.
