Các lớp bảo vệ bên trong và vai trò của lòng đỏ
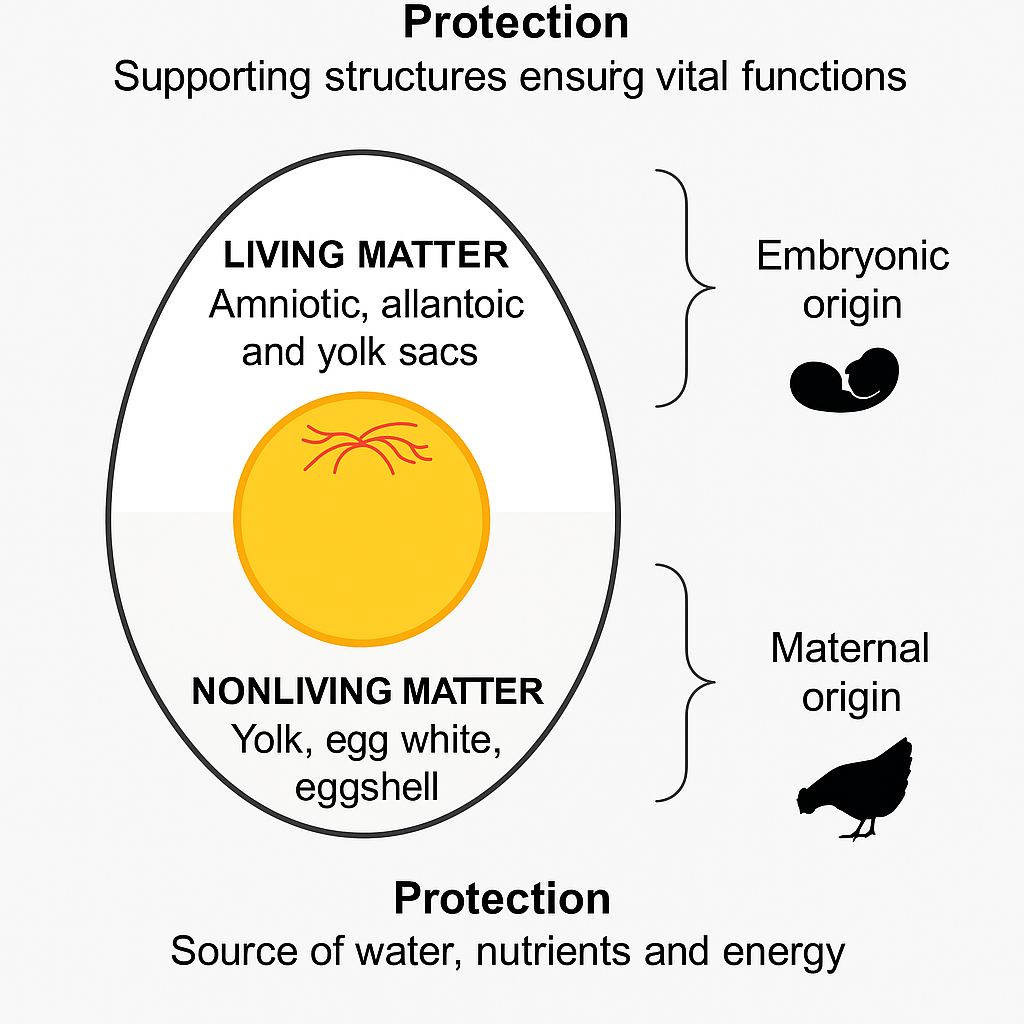
- Trong số các hệ thống bảo vệ của trứng, mặc dù có sự hiện diện của globulin miễn dịch Y (IgY) từ mẹ truyền sang, lòng đỏ vẫn là phần dễ bị nhiễm khuẩn nhất vì chứa nhiều chất dinh dưỡng thiết yếu cho phôi – đồng thời cũng là “nguồn nuôi dưỡng” lý tưởng cho sự phát triển của vi khuẩn cơ hội khi xâm nhập.
- Để giảm thiểu nguy cơ này, lòng đỏ được giữ cơ học ở vị trí trung tâm nhờ hai dây chằng xoắn (chalazae) – những sợi protein trong suốt gắn ở hai cực của trứng. Cấu trúc này giúp lòng đỏ tránh tiếp xúc với mặt trong của màng vỏ trứng, nơi mầm bệnh có thể tích tụ, đồng thời bảo vệ phôi khỏi các va đập cơ học.
Lòng trắng trứng
- Chủ yếu bao gồm nước (~88%) và protein (~9,7–10,6%), lòng trắng trứng là một dịch sinh học có khả năng kháng lại nhiễm khuẩn. Những đặc tính này được tạo nên từ nhiều yếu tố, bao gồm sự hiện diện của nhiều phân tử kháng khuẩn, kết hợp với các đặc tính lý – hóa đặc biệt như pH kiềm và độ nhớt.
- Lòng trắng trứng là một chất lỏng không đồng nhất, gồm ba lớp chồng lên nhau với độ nhớt khác nhau: lớp lòng trắng mỏng ngoài (tiếp xúc với vỏ trứng), lớp lòng trắng dày ở giữa, và lớp lòng trắng mỏng trong (tiếp xúc với lòng đỏ). Lớp chalaziferous bao quanh lớp quanh noãn hoàng (perivitelline layer) và tạo thành các cấu trúc sợi xoắn (chalazae) nối lòng đỏ với hai cực của trứng.
- Ở trứng tươi, ở 20°C và tốc độ cắt 34,2/s, độ nhớt biểu kiến của lòng trắng dày cao gấp khoảng 40 lần so với lòng trắng mỏng. Lòng trắng dày tạo thành một “viên nang” bao quanh lòng đỏ, cùng với dây chằng chalazae, giúp giữ lòng đỏ ở vị trí trung tâm của trứng mới đẻ.
- Lòng trắng trứng nhìn chung có tác dụng diệt khuẩn đối với vi khuẩn Gram dương và có tác dụng kìm khuẩn hoặc diệt khuẩn đối với vi khuẩn Gram âm. Do đó, cùng với vỏ trứng và lớp quanh noãn hoàng, lòng trắng trứng tạo thành một mô hình phòng thủ bẩm sinh thụ động đặc biệt, khi chỉ có một số ít vi khuẩn – bao gồm Salmonella enterica serovar Enteritidis – có thể xâm nhập trứng theo đường lây truyền dọc hoặc ngang và sống sót trong lòng trắng. Trong các loài phụ của S. enterica subspecies enterica, serotype Enteritidis có khả năng sống sót trong lòng trắng cao hơn các serotype Salmonella khác.
- Bản chất kháng khuẩn của lòng trắng trứng phụ thuộc không chỉ vào các đặc tính lý – hóa và hóa học (pH kiềm, độ nhớt, các phân tử kháng khuẩn) mà còn vào nhiệt độ môi trường. Trong khi tác dụng kìm khuẩn đối với S. Enteritidis được quan sát ở nhiệt độ trung bình, thì ở 42°C (nhiệt độ cơ thể gà mái) hoặc cao hơn, lòng trắng thể hiện tác dụng diệt khuẩn chống Salmonella đối với cùng vi khuẩn này.
- Khi tiếp xúc với môi trường lòng trắng ở 45°C, S. Enteritidis có những thay đổi lớn trong hệ gene biểu hiện, liên quan đến tình trạng thiếu dinh dưỡng (đặc biệt là thiếu sắt và biotin), tổn thương/tác động stress lên tế bào, cùng sự thay đổi trong chuyển hóa năng lượng và dị hóa.
- Một số nghiên cứu transcriptome và proteome toàn cục đã được tiến hành để khảo sát phản ứng gene của S. Enteritidis đối với lòng trắng. Ở nhiệt độ diệt khuẩn (45°C), người ta ghi nhận những thay đổi lớn liên quan đến thiếu dinh dưỡng (đặc biệt thiếu sắt và biotin), tổn thương tế bào/stress, và sự thay đổi trong quá trình chuyển hóa năng lượng và dị hóa. Ở 37°C, lòng trắng làm tăng biểu hiện của nhiều gene của S. Enteritidis liên quan đến sửa chữa tổn thương DNA, thích nghi với pH kiềm, thích nghi với stress thẩm thấu, sửa chữa tổn thương màng tế bào, cụm gene Salmonella pathogenicity island 2, hấp thu sắt và tổng hợp biotin.
- Ở mức protein, các protein liên quan đến thu nhận sắt, sinh tổng hợp cofactor và axit amin, vận chuyển, điều hòa và đáp ứng stress được tăng cường, trong khi các protein liên quan đến chuyển hóa năng lượng, độc lực, khả năng di động và hóa ứng động lại giảm.
- Ngoài ra, một nghiên cứu sàng lọc thư viện chèn đột biến toàn bộ hệ gene dựa trên microarray đã chỉ ra rằng các con đường sinh tổng hợp lipopolysaccharide (LPS) và protease serine/protein sốc nhiệt (HtrA) là những yếu tố then chốt giúp vi khuẩn sống sót trong lòng trắng ở nhiệt độ cơ thể gà mái (42°C). Đáng chú ý, một nghiên cứu gần đây báo cáo rằng kênh màng ngoài TolC (một phần của hệ thống bơm tống đa thuốc) được hoạt hóa bởi lòng trắng ở 42°C và bảo vệ S. Enteritidis chống lại ức chế tăng trưởng do ovotransferrin gây ra.
- Tất cả những quan sát này nhấn mạnh đặc tính gây bất lợi cho vi khuẩn của lòng trắng trứng và các chiến lược sinh tồn mà S. Enteritidis phát triển để đối phó.
pH của lòng trắng trứng
- pH của lòng trắng trứng tại thời điểm đẻ vào khoảng 7,6, nhưng sẽ tăng dần (tốc độ tăng phụ thuộc vào nhiệt độ) lên 9 hoặc cao hơn chỉ trong vài ngày bảo quản ngoài không khí. Sự tăng pH này là do mất CO₂ – tồn tại trong lòng trắng dưới dạng khí hòa tan hoặc dạng ion – thoát ra ngoài qua các lỗ vỏ trứng. pH của lòng trắng thực chất phụ thuộc vào trạng thái cân bằng giữa CO₂ hòa tan, HCO₃⁻, CO₃²⁻ và protein.
- Nồng độ HCO₃⁻ và CO₃²⁻ được quyết định bởi áp suất riêng phần của CO₂ trong môi trường xung quanh trứng. Ở trứng đã thụ tinh, pH lòng trắng mang tính kiềm trong 2 ngày đầu của quá trình ấp. Sau đó, pH giảm xuống do sự tiết ion H⁺ từ lá phôi (blastoderm) và sự sản xuất CO₂ từ các mô phôi đang phát triển [55], tạo ra một vi môi trường tối ưu cho sự phát triển của phôi.
- Môi trường kiềm trong lòng trắng sau thời gian bảo quản, hoặc ở giai đoạn đầu ấp, thường bất lợi cho các vi khuẩn không ưa kiềm, vốn thường phát triển ở pH 5,5–9,0. Thực tế, hầu hết vi khuẩn phải duy trì pH nội bào trong khoảng hẹp 7,4–7,8 để đảm bảo chức năng và tính toàn vẹn cấu trúc tối ưu của protein bào tương. pH kiềm chủ yếu tác động đến trạng thái hô hấp của tế bào vi khuẩn, vốn cần duy trì lực vận chuyển proton (proton motive force) và điện thế điện hóa xuyên màng.
- Vi khuẩn có nhiều chiến lược để đối phó với môi trường kiềm, chẳng hạn như tăng cường hấp thu và giữ lại proton (ví dụ: điều chỉnh hoạt động ATP synthase và các hệ thống trao đổi cation đơn trị/proton), thay đổi chuyển hóa để tăng sản xuất acid, và thay đổi lớp bề mặt tế bào nhằm hỗ trợ giữ proton trong bào tương.
- Ngoài việc thúc đẩy nhập proton, pH cao còn ức chế các hệ thống tốn nhiều năng lượng như tổng hợp roi (flagella) và hóa ứng động. Ở khía cạnh này, S. Enteritidis bị mất roi ở pH kiềm, điều này có thể hạn chế khả năng di chuyển của vi khuẩn trong lòng trắng và tiếp cận nguồn dinh dưỡng từ lòng đỏ.
Độ nhớt của lòng trắng trứng
- Độ nhớt của lòng trắng cũng ảnh hưởng đến khả năng di chuyển của vi khuẩn có roi. Cấu trúc dạng gel của lớp lòng trắng dày ức chế sự di chuyển của vi khuẩn có roi và làm chậm quá trình chúng tiến về phía lòng đỏ. Thực tế, tốc độ bơi và tốc độ quay roi của S. Typhimurium bị ảnh hưởng đáng kể trong lòng trắng dày so với lòng trắng mỏng. Cả lòng trắng mỏng và dày đều có tác dụng xua đuổi S. Typhimurium và gây ra hiện tượng đảo chiều quay roi.
- Cấu trúc dạng gel của lòng trắng dày là do sự hiện diện của một loại protein glycosyl hóa có gắn nhóm sulfate, khối lượng phân tử rất lớn, gọi là ovomucin. Hàm lượng ovomucin trong lớp lòng trắng dày cao gấp khoảng bốn lần so với lớp lòng trắng mỏng. Protein này gồm hai tiểu đơn vị: tiểu đơn vị α có hàm lượng carbohydrate thấp (MUC5B) và tiểu đơn vị β giàu carbohydrate (MUC6).
- Độ nhớt của lòng trắng đạt mức cao nhất tại thời điểm trứng được đẻ, và giảm dần theo thời gian khi pH tăng, với tốc độ thay đổi phụ thuộc vào nhiệt độ bảo quản. Quá trình hóa lỏng này, gọi là thinning của lòng trắng, có thể tạo điều kiện cho vi khuẩn di chuyển và tiến tới lòng đỏ giàu dinh dưỡng.
- Đáng chú ý, ovomucin có thể tương tác trong dung dịch với protein kháng khuẩn lysozyme thông qua liên kết điện tích để tạo thành phức hợp không tan trong nước. Mặc dù cơ chế phân tử của quá trình hóa lỏng lòng trắng chưa được mô tả rõ ràng, người ta giả thuyết rằng hiện tượng này có thể do sự tách rời các phức hợp ovomucin–lysozyme trong điều kiện kiềm. Do đó, quá trình hóa lỏng có thể liên quan đến việc hòa tan một số protein kháng khuẩn vốn bị giữ lại trong cấu trúc gel ban đầu, dẫn đến sự giải phóng các hoạt tính kháng khuẩn nội tại của chúng.
Lớp quanh noãn hoàng (màng noãn hoàng)
- Lớp quanh noãn hoàng, còn gọi là màng noãn hoàng, là một lớp protein mỏng bao bọc và giữ các chất dinh dưỡng của lòng đỏ, vốn được dành cho phôi đang phát triển. Ngoài vai trò trong quá trình thụ tinh và giai đoạn phát triển phôi sớm, lớp quanh noãn hoàng còn tham gia bảo vệ cả phôi và các chất dinh dưỡng của lòng đỏ trong giai đoạn ấp sớm. Cụ thể, hàng rào sinh học này bảo vệ các tế bào phôi khỏi môi trường kiềm của lòng trắng trứng, đồng thời hạn chế sự khuếch tán chất dinh dưỡng từ lòng đỏ sang lòng trắng và ngăn chặn sự xâm nhập của vi khuẩn từ lòng trắng vào lòng đỏ.
- Ở trứng gà, lớp quanh noãn hoàng gần như hoàn toàn được cấu tạo từ protein. Khoảng 140 loại protein khác nhau đã được xác định bằng phương pháp khối phổ. Lớp quanh noãn hoàng gồm hai lớp chồng lên nhau: lớp quanh noãn hoàng trong và lớp quanh noãn hoàng ngoài, lần lượt tiếp xúc với lòng đỏ và lòng trắng, được ngăn cách bởi một “màng liên tục” dạng hạt rất mỏng.
- Lớp quanh noãn hoàng trong ở gà được hình thành ban đầu trong nang trứng tại buồng trứng trước khi rụng trứng và có cấu trúc mạng lưới sợi ba chiều. Ở mức phân tử, các cấu trúc dạng sợi này chủ yếu được tạo thành từ các phức hợp protein Zona Pellucida ZP1–ZP3, sắp xếp thành các sợi xoắn ốc, sau đó kết hợp thành bó để tạo nên ma trận ZP1–ZP3. Ngoài ra, protein Zona Pellucida D (ZPD) kết tập và liên kết với ma trận ZP1–ZP3 để hình thành cấu trúc hoàn chỉnh của lớp quanh noãn hoàng trong. Các protein ZP này có khả năng liên quan đến quá trình bám dính của tinh trùng và phản ứng cực đầu (acrosome reaction). Cho đến nay, chưa có báo cáo trực tiếp nào về chức năng miễn dịch bẩm sinh của protein ZP ở gà, mặc dù ZPD có thể có vai trò miễn dịch do tương đồng với protein uromodulin ở người, vốn tham gia bảo vệ kháng khuẩn và điều hòa miễn dịch trong đường tiết niệu của người.
- Lớp quanh noãn hoàng ngoài được tổng hợp tại đoạn gần của ống dẫn trứng (phần phễu – infundibulum) sau khi rụng trứng và bao phủ lên lớp quanh noãn hoàng trong. Nó gồm một số lớp phụ chồng lên nhau với các sợi dài và thẳng. Các protein chính tạo nên lớp quanh noãn hoàng ngoài ở gà gồm ovomucin, lysozyme, và các protein VMO1 và VMO2 (hiện được gọi là avian β-defensin-11, AvBD11).
- Mặc dù thành phần protein của lớp quanh noãn hoàng có thể khác nhau tùy loài gia cầm, nhưng các đặc tính miễn dịch bẩm sinh của những hợp chất chính này cho thấy rõ ràng chức năng kháng khuẩn của lớp quanh noãn hoàng ngoài. Người ta giả thuyết rằng lysozyme đóng góp vào cấu trúc lớp này thông qua tương tác điện tích với ovomucin. Nghiên cứu trên chim cút cho thấy VMO2/AvBD11 có thể đóng vai trò cấu trúc trong lớp quanh noãn hoàng ngoài, bằng cách trung gian liên kết giữa lớp ngoài và lớp trong, có thể thông qua sự kết hợp với các protein ZP1 và ZP3.
- Việc duy trì tính nguyên vẹn của lớp quanh noãn hoàng ngoài là yếu tố then chốt để ngăn ngừa hoặc hạn chế vi khuẩn xâm nhập từ lòng trắng vào lòng đỏ. Tuy nhiên, tính nguyên vẹn này có thể bị ảnh hưởng bởi nhiều yếu tố, đặc biệt là điều kiện bảo quản trứng trước khi ấp (ví dụ: nhiệt độ cao, thời gian bảo quản dài).
Lòng đỏ trứng
- Lòng đỏ là nguồn dinh dưỡng chính cho phôi, và do đó, khi vi khuẩn xâm nhập được vào khoang này của trứng, chúng sẽ tận dụng môi trường giàu dinh dưỡng để sinh sôi, lan rộng và xâm chiếm tất cả các khoang khác của trứng, bao gồm cả phôi.
- Mặc dù lòng đỏ chứa hàm lượng cao các globulin miễn dịch từ mẹ, nhưng các kháng thể này không hiệu quả trong việc chống lại sự xâm nhập của vi khuẩn, vì chúng không thể ngăn chặn được tốc độ sinh trưởng theo cấp số nhân của vi khuẩn khi đã xâm nhập vào lòng đỏ. Do đó, đóng góp của lòng đỏ đối với miễn dịch bẩm sinh của trứng và bảo vệ phôi đang phát triển dường như khá hạn chế, ít nhất là trong nửa đầu của quá trình ấp.
- Sự chuyển giao IgY từ lòng đỏ sang phôi dường như chủ yếu xảy ra trong nửa sau của thời kỳ ấp, với sự tham gia của các thụ thể IgY có ái lực cao được biểu hiện bởi túi noãn hoàng trong giai đoạn phát triển muộn. Các globulin miễn dịch IgY từ mẹ trong lòng đỏ đặc biệt quan trọng tại thời điểm nở, vì chúng tạo thành tuyến phòng thủ đầu tiên và bù đắp cho sự chưa trưởng thành của hệ tiêu hóa gà con sau khi nở.
Các phân tử kháng khuẩn
- Trứng gia cầm chứa vô số các chất kháng khuẩn được phân bố trong tất cả các cấu trúc của trứng (vỏ trứng, lòng trắng, lớp quanh noãn hoàng, lòng đỏ). Tuy nhiên, sự đa dạng và hàm lượng của chúng khác nhau rất nhiều tùy theo từng cấu trúc.
- Ở lòng đỏ, như đã đề cập ở phần trước, các chất kháng khuẩn không phong phú (ngoại trừ globulin miễn dịch), trái ngược với hàm lượng dinh dưỡng cao khiến khoang này đặc biệt nhạy cảm với nhiễm khuẩn.
- Ở vỏ trứng, khả năng sẵn có (bioavailability) và hoạt tính của các hợp chất này với vai trò là chất kháng khuẩn có thể bị hạn chế do chúng tích hợp vào pha khoáng và do ma trận hữu cơ (protein) chỉ chiếm khoảng 3,5% khối lượng vỏ, vốn chủ yếu được cấu tạo từ khoáng calcit. Tuy nhiên, một số thành phần này có thể được giải phóng và hòa tan trong quá trình khử khoáng xảy ra ở trứng đã thụ tinh đang ấp (nhằm cung cấp nguồn canxi cho phôi), và từ đó tạo sự bảo vệ bổ sung tại chỗ, giữa lớp vỏ trong và màng niệu – màng đệm (chorioallantoic membrane, CAM).
- Bằng chứng đầu tiên về sự hiện diện của protein kháng khuẩn trong vỏ trứng được tìm thấy từ các nghiên cứu về cơ chế khoáng hóa vỏ trứng. Lysozyme và ovotransferrin là các protein kháng khuẩn đã được xác định là thành phần của ma trận vỏ. Vai trò tương tự cũng được ghi nhận cho ovocalyxin-32 (OCX-32) và ovocalyxin-36 (OCX-36), vốn tập trung nhiều trong vỏ trứng. Nghiên cứu proteomics về các protein ma trận vỏ trong quá trình canxi hóa đã xác định được 35 ứng viên protein kháng khuẩn.
- Protein OCX-32 tái tổ hợp đã được báo cáo có khả năng kháng Bacillus subtilis. OCX-36 thuộc họ protein BPI (bactericidal permeability-increasing protein)/LBP (lipopolysaccharide-binding protein)/PLUNC (palate, lung, and nasal epithelium clone), vốn được biết đến ở động vật có vú với vai trò chống lại vi khuẩn. Đây là nhóm protein thuộc siêu họ tham gia hệ miễn dịch bẩm sinh, đóng vai trò tuyến phòng thủ đầu tiên của vật chủ. LBP liên kết với thành phần lipid A của lớp LPS ở vi khuẩn Gram âm. BPI cũng liên kết với LPS, dẫn đến làm thấm màng tế bào chất và giảm điện thế màng của vi khuẩn, từ đó gây chết tế bào.
- OCX-36 tinh khiết cho thấy khả năng gắn kết mạnh với LPS của E. coli và có thể ức chế ở mức vừa phải sự phát triển của B. subtilis, E. coli, và Pseudomonas aeruginosa. Ngoài ra, OCX-36 và dạng OCX-36 được tiêu hóa bằng enzym có thể điều hòa khác nhau các đáp ứng miễn dịch in vitro và in vivo. Đáng chú ý, OCX-36 là protein đặc hữu ở loài chim, vì không tìm thấy gen tương đồng của nó ở động vật có vú hoặc cá xương.
- Ovocleidin-17 và ansocalcin là các lectin type C, là những protein phong phú trong vỏ trứng gà và ngỗng. Chúng được chứng minh có tác dụng diệt P. aeruginosa, B. subtilis và Staphylococcus aureus, với hoạt tính tăng cường khi có mặt canxi. Các tác giả cũng cho thấy hai protein này có khả năng gắn với polysaccharide của vi khuẩn.
Các phân tử kháng khuẩn trong lớp phòng thủ bên trong của trứng
- Bên cạnh hàng rào vật lý và hóa học, trứng gia cầm còn sở hữu một hệ thống các phân tử kháng khuẩn đặc hiệu, đóng vai trò tuyến phòng thủ thứ hai. Các chất này hiện diện trong màng vỏ, lòng trắng và cả lớp quanh noãn hoàng, tạo nên một môi trường sinh học bất lợi cho vi khuẩn, virus và nấm.
Protein kháng khuẩn trong màng vỏ trứng
- Một số protein đặc thù được tìm thấy với nồng độ cao trong màng vỏ trứng, tiêu biểu là OCX-36 và các β-defensin ở gia cầm (AvBDs). Đây là những peptide cationic có khả năng phá vỡ màng tế bào vi khuẩn, đồng thời còn thể hiện hoạt tính chống virus và nấm. Trong các nghiên cứu proteomics, các AvBD như AvBD3, AvBD9 và AvBD10 đã được phát hiện trong màng vỏ trứng gà, cùng với gallin (ovodefensin A1) – một phân tử có tác dụng mạnh trong việc ức chế E. coli.
Protein kháng khuẩn chủ đạo trong lòng trắng
Lòng trắng trứng là nơi tập trung nhiều nhất các phân tử kháng khuẩn. Hai protein nổi bật nhất là lysozyme (LYZ) và ovotransferrin (TF).
- Lysozyme chiếm khoảng 3,4% tổng lượng protein của lòng trắng và có khả năng tiêu diệt vi khuẩn theo nhiều cơ chế. Nó vừa có hoạt tính enzym (muramidase) để phân giải peptidoglycan thành tế bào vi khuẩn Gram dương, vừa có thể tác động trực tiếp làm tăng tính thấm màng, dẫn đến chết tế bào ở cả vi khuẩn Gram âm. Đáng chú ý, ngay cả dạng lysozyme bất hoạt enzym hoặc bị biến tính do nhiệt vẫn duy trì được khả năng diệt khuẩn nhờ các cơ chế không phụ thuộc enzym.
- Ovotransferrin lại hoạt động bằng cách gắn chặt ion sắt, làm giảm nguồn dinh dưỡng thiết yếu cho vi khuẩn, từ đó kìm hãm sự phát triển của chúng.
Cơ chế phối hợp đa dạng
Các phân tử kháng khuẩn trong trứng có thể hoạt động độc lập hoặc bổ trợ lẫn nhau thông qua nhiều cơ chế:
- Phá hủy cấu trúc vi khuẩn bằng cách tăng tính thấm màng (như lysozyme, AvBDs).
- Hạn chế nguồn dinh dưỡng cần thiết cho vi sinh vật, điển hình là ovotransferrin (gắn sắt) và avidin (gắn biotin).
- Ức chế protease – một yếu tố độc lực quan trọng của mầm bệnh – nhờ các protein như ovoinhibitor và cystatin.
Đặc điểm tiến hóa đặc thù ở loài chim
Điều đáng chú ý là một số protein này, chẳng hạn AvBD11, OVALX, AVD, OvoDA1, không có gen tương đồng ở động vật có vú hoặc bò sát. Điều đó cho thấy chúng là sản phẩm tiến hóa đặc thù, phục vụ riêng cho quá trình bảo vệ bẩm sinh của trứng gia cầm, đồng thời có thể liên quan đến các chức năng sinh sản đặc hiệu ở chim.